미분은 세포벽의 크기다
그라인더 다이얼을 돌리면 커피 가루의 큰 봉우리는 따라 움직이는데, 30~40 µm 근처의 미분 봉우리는 제자리에 있다. 볶은 원두의 세포는 지름 20~45 µm로 그 봉우리와 같은 크기다. 균열 자리의 세포가 떨어져 나온다고만 가정한 세포 조직 모델에서도 간극을 바꾸는 동안 미분 봉우리는 세포 크기에 머물렀고, 세포를 없애면 봉우리가 사라졌다. 미분의 양은 대략 세포 크기 ÷ 간극을 따랐다. 직접 갈아 보는 시뮬레이션과 함께 정리했다.
지난 편에서는 원두 한 알을 두 판 사이에 놓고 눌렀다. 원두는 30~60 N에서 처음 갈라졌고, 한 번에 가루가 되지 않고 조각이 하나씩 쪼개지며 부서졌다. 이번 편은 그 조각들이 더 잘게 부서지는 끝을 본다. 끝까지 부서지면 무엇이 남을까.
1부에서 사진으로 입자를 잴 때 미분은 늘 골칫거리였다. 너무 작아서 화소 몇 개로만 찍히고, 서로 붙고, 개수로 세면 거의 전부인데 무게로 세면 조금이다. 그때는 미분을 잘 재는 법만 따졌다. 그런데 레이저 회절로 잰 커피 가루의 분포를 여러 장 겹쳐 보면 이상한 점이 하나 있다. 그라인더 다이얼을 돌리면 큰 입자의 봉우리는 따라 움직이는데, 미분의 봉우리는 늘 같은 자리에 있다. 이번 편의 질문은 이것이다. 미분 봉우리는 왜 움직이지 않을까.
다이얼을 돌려도 움직이지 않는 봉우리
아래 그림은 이탈리아 일리(illy)의 분쇄 커피 네 가지를 레이저 회절로 잰 분포다(Mo 등 2023). E는 에스프레소, H는 캡슐, M은 모카포트, F는 드립용이다. 같은 미디엄 로스트 아라비카 블렌드를 굵기만 달리해 갈았다.
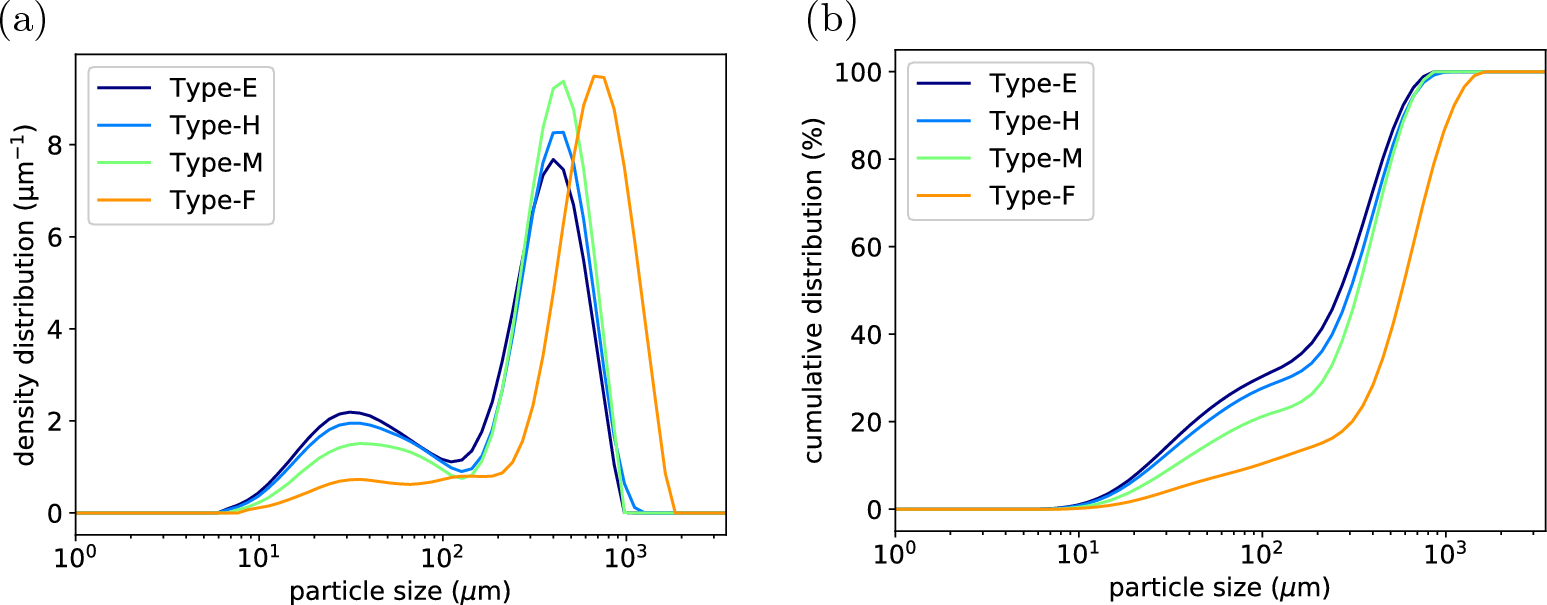
그림: Mo 등(2023), Scientific Reports 13:16374, 그림 3. CC BY 4.0
큰 봉우리는 에스프레소용 약 400 µm에서 드립용 약 700 µm로 옮겨 갔다. 작은 봉우리는 네 가루 모두 30~35 µm 근처에 그대로 있고 높이만 달라졌다. 100 µm보다 작은 입자가 차지하는 부피는 에스프레소용 29.2%, 캡슐용 27.5%, 모카용 20.3%, 드립용 9.7%였다.
다른 연구에서도 같은 모습이 나온다.
| 연구 | 바꾼 것 | 미분 봉우리 | 큰 봉우리 |
|---|---|---|---|
| Cameron 등 2020 | 같은 그라인더(EK43) 설정 2.5 → 1.0 | 네 설정 모두 약 50 µm | 약 420 → 270 µm |
| Mo 등 2023 | 같은 원두, 네 가지 굵기 | 네 가루 모두 약 30~35 µm | 약 400 → 700 µm |
| Moroney 등 2019 | 가는 가루와 굵은 가루(그라인더·원두 다름) | 둘 다 약 28 µm | 약 550 / 950 µm |
| Harper 등 2024 | 같은 설정, 라이트 vs 다크 로스트 | 둘 다 약 50 µm | 약 310 / 280 µm |
| Eiermann 등 2020 | 시판 캡슐 43종 | 보통 약 50 µm | 250~550 µm |
봉우리 위치는 논문 그림에서 읽은 값이다.
카메론 등(2020)은 이렇게 썼다. "분쇄 설정을 가늘게 하면 미분의 비율은 늘어나지만 크기는 그대로다." 캡슐 43종을 잰 아이어만 등(2020)도 "두 봉우리는 자리를 지키고 높이만 바뀐다"고 정리했다.
표에서 봉우리 위치가 25 µm부터 50 µm까지 퍼져 있는 것은 장비와 그리는 방식이 달라서다. 같은 논문 안에서 설정을 바꿨을 때 위치가 움직이지 않는다는 점은 모두 같다. 무엇으로 무게를 주느냐도 중요하다. 「개수로 세느냐 부피로 세느냐」 편에서 본 것처럼, 같은 가루를 개수로 세면 봉우리가 훨씬 작은 쪽으로 간다. 우먼 등(2016)은 같은 EK43 가루에서 개수 기준 봉우리를 13~14 µm, 표면적 기준 봉우리를 27.4 µm로 쟀다. 이 글에서 말하는 '30~40 µm 봉우리'는 부피로 무게를 준 분포의 봉우리다.
원두 속 세포 하나의 크기
30~40 µm라는 숫자가 어디서 왔는지는 원두 속을 들여다보면 짐작이 간다.
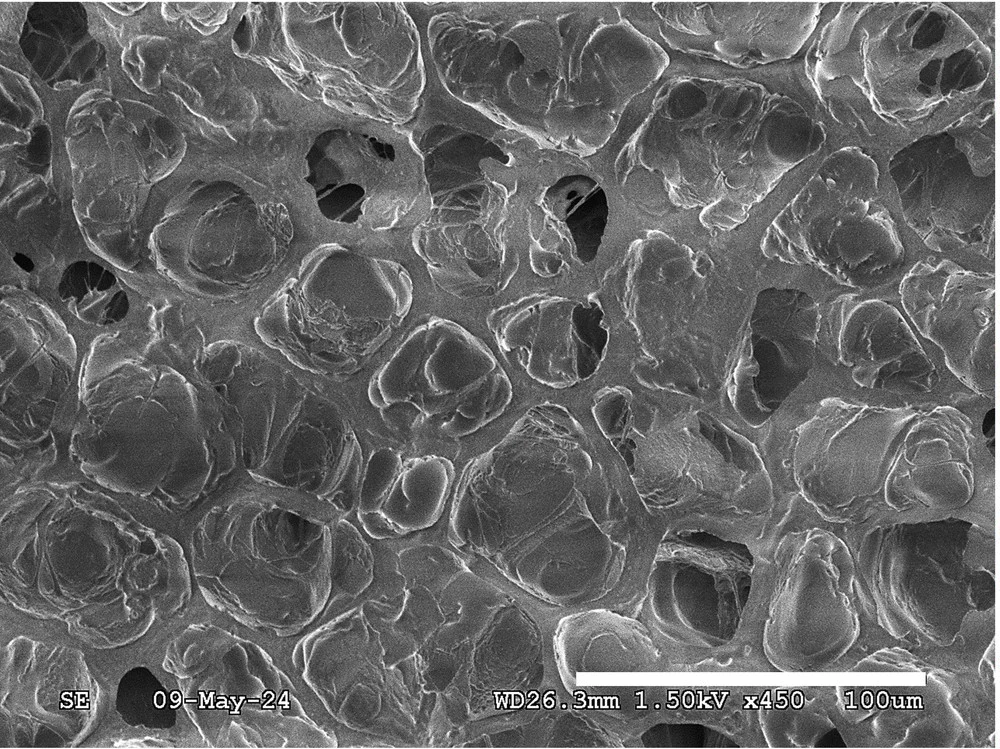
그림: Lindsey 등(2024), Scientific Reports 14:28831, 그림 3 왼쪽 절반. CC BY 4.0
볶은 원두를 쪼개 주사전자현미경으로 찍은 사진이다(Lindsey 등 2024). 로스팅 정도에 따른 카페인 추출을 다룬 논문에 실린 그림이다. 구멍 하나가 세포 하나다. 볶는 동안 세포 속의 물과 내용물이 빠져나가거나 벽 쪽으로 밀려나서, 세포 가운데가 비어 있다. 스위스 ETH의 셴커(2000)는 이것을 "파낸 세포(excavated cells)"라고 불렀고, 로스팅 중에 가장 끝까지 버티는 구조가 세포벽 골격이라고 썼다.
세포의 크기는 연구마다 조금씩 다르게 잰다.
- 린지 등(2024)이 사진에서 잰 세포 속 빈 공간은 넓이로 약 230~630 µm²이고, 로스팅이 진할수록 컸다. 같은 넓이의 원으로 바꾸면 지름 17~28 µm다
- 같은 논문의 세포 밀도로 세포 중심 사이 간격을 계산하면 약 33~45 µm다. 빈 공간에 벽 두께를 더한 값이다
- 모 등(2023)은 세포 크기를 25~50 µm로 적었다
- 셴커(2000)가 인용한 카지와 클리퍼드(1985)는 볶은 원두의 평균 세포 크기를 일반 로스팅에서 21~23 µm, 원두를 크게 부풀리는 고수율 로스팅에서 34~40 µm로 보고했다. 원문은 찾지 못했다
정리하면 볶은 원두의 세포는 지름 20~45 µm 정도다. 미분 봉우리 25~50 µm와 같은 범위다.
규모로 바꿔 보면 이렇다. 세포 지름을 35 µm로 잡으면 1 mm 길이에 세포가 약 29개 늘어선다. 에스프레소용 가루의 큰 입자 하나(약 300 µm)에는 세포가 수백 개 들어 있다. 원두 한 알에는 대략 수백만 개가 있다. 큰 입자는 세포 수백 개가 붙은 덩어리이고, 미분은 세포 하나 또는 그보다 작은 조각이다.
세포벽의 두께는 끝내 숫자로 찾지 못했다. 셴커(2000)는 커피 배유 세포의 벽을 "유난히 두껍다"고만 적었다. 위 사진으로 보면 벽은 수 µm 정도다. 생두 세포 사이에는 빈틈이 없고, 벽은 대부분 두꺼운 2차벽이다(셴커 2000).
미분은 어디서 생기나
미분이 세포 크기인 이유로 연구자들이 드는 설명은 이렇다. 모로니 등(2019)은 미분 봉우리를 "분쇄 중 깨진 커피 세포벽 조각으로 된 작은 박편"이라고 했고, 그 위치가 "커피 세포의 전형적인 크기"라고 적었다. 모 등(2023)도 "미분은 세포 조각"이라고 썼다. 카메론 등(2020)은 미분이 "균열 계면에서 생긴다고 생각된다"고 했다.
다만 이것은 설명이지 확인된 사실은 아니다. 미분 입자 하나하나를 현미경으로 들여다보고 세포벽 조각임을 보인 동료심사 연구는 이번에 찾지 못했다. 모로니 등도 이 문장에 근거 문헌을 달지 않았다.
간접 증거는 몇 가지 있다. 우먼 등(2016)은 차가운 원두를 망치로 한 번 때렸더니 작은 입자가 조금밖에 생기지 않았다고 썼다. 대부분의 미분은 첫 균열이 아니라 버 안에서 조각이 되풀이해 부서질 때 생긴다는 뜻이다. 위의 쪼갠 면 사진에서도 세포 속 빈 공간이 열린 채 줄지어 보인다. 균열이 세포 사이를 따라갔다면 세포의 바깥면이 보였을 것이다. 손으로 쪼갠 볶은 원두에서는 균열이 세포를 가로질러 벽을 끊고 지나갔다고 읽힌다. 이건 사진을 보고 내가 해석한 것이다.
다른 식물 재료에서도 비슷한 일이 있다. 밀가루의 입도 분포는 봉우리가 둘인데, 작은 쪽 봉우리는 밀 배유 속 전분 알갱이 크기(10 µm 안팎)에서 생긴다. 생물이 만든 단위가 작은 봉우리의 자리를 정하는 것이다. 병아리콩은 마른 채로 빻으면 세포가 깨지지만, 먼저 삶아 세포 사이의 접착층을 약하게 한 뒤 빻으면 세포가 통째로 떨어진 '세포 가루'가 된다. 균열이 세포를 가로지르느냐 세포 사이로 가느냐는 재료의 상태에 따라 바뀐다.
세포 조직을 깨뜨리는 모델
그래서 확인해 보고 싶었다. 세포가 있다는 사실 하나만으로 미분 봉우리가 세포 크기에 고정될까. 그러려면 균열이 어떻게 지나가는지까지 맞힐 필요는 없다. 아주 단순한 모델로 시작했다.
- 2 mm 정사각형 원두 단면을 세포로 채운다. 씨앗 점을 고르게 흩고, 화소마다 가장 가까운 씨앗을 찾아 세포를 만든다(보로노이 분할). 세포 지름은 평균 35 µm, 들쭉날쭉한 정도는 약 30%로 했다
- 크기가 간극보다 큰 조각은 아무 방향의 직선 균열 하나로 둘로 갈린다. 간극 근처의 조각은 운에 따라 한 번 더 갈리기도 한다
- 균열이 지나가는 자리의 세포 한 겹은 정해진 확률로 으스러진다. 으스러진 세포는 조각에서 떨어져 나와 미분이 된다. 속이 빈 세포가 깨지면 벽 조각으로 흩어지는데, 조각 하나의 크기는 세포 한 면 정도라고 봤다
- 나머지 세포는 균열 양쪽으로 나뉘고, 이어진 덩어리마다 새 조각이 된다. 모든 조각이 간극보다 작아질 때까지 되풀이한다
부피는 단면 넓이로 셌다. 단면에서 어떤 성분이 차지하는 넓이의 비율은 부피의 비율과 같다(들레스의 원리). 이 모델에서 손으로 정한 숫자는 '으스러짐' 하나뿐이다. 이 값은 모 등(2023)의 네 가루에 맞췄다. 큰 봉우리 위치를 간극으로 보고 100 µm 아래 부피를 비교했더니 11%일 때 가장 잘 맞았다. 이때 모델은 29.2%, 27.5%, 20.3%, 9.7%를 각각 25%, 23%, 23%, 13%로 냈다.
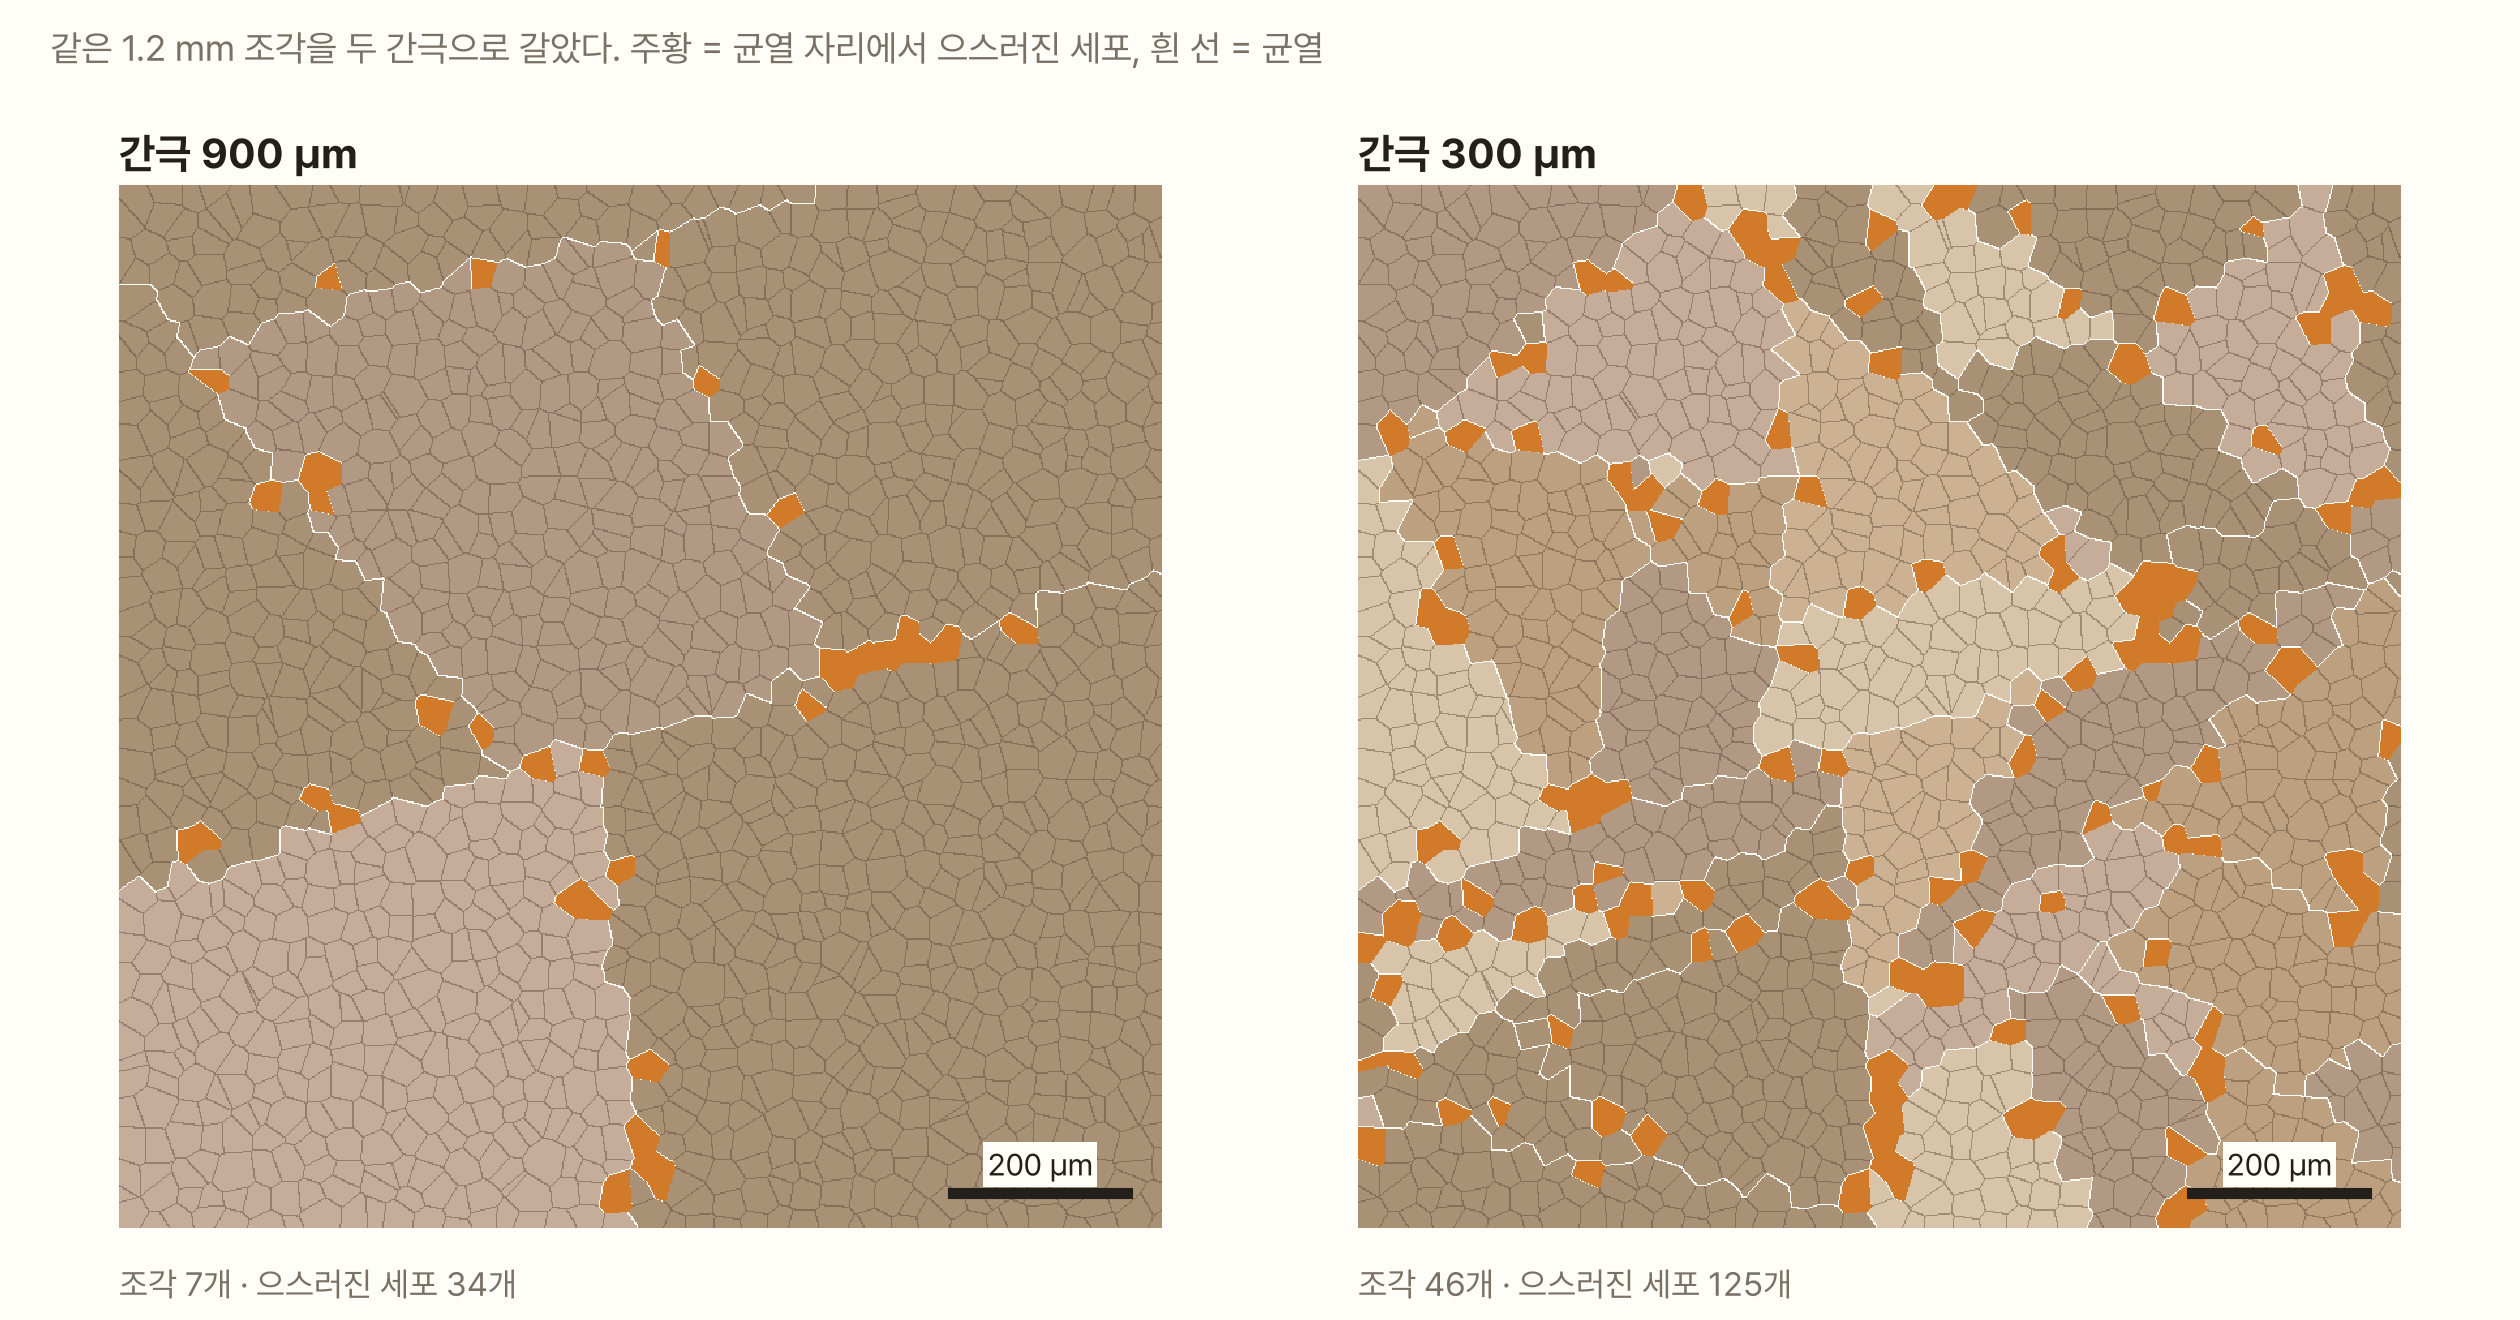
간극을 좁히면 균열이 늘고, 균열이 늘면 으스러진 세포도 는다. 그런데 으스러진 세포 하나의 크기는 간극과 상관없이 같다.
간극, 세포, 그리고 세포 없는 재료
모델을 여러 조건에서 돌려 분포를 그려 봤다. 조건마다 단면 다섯 장을 갈아 합쳤다.
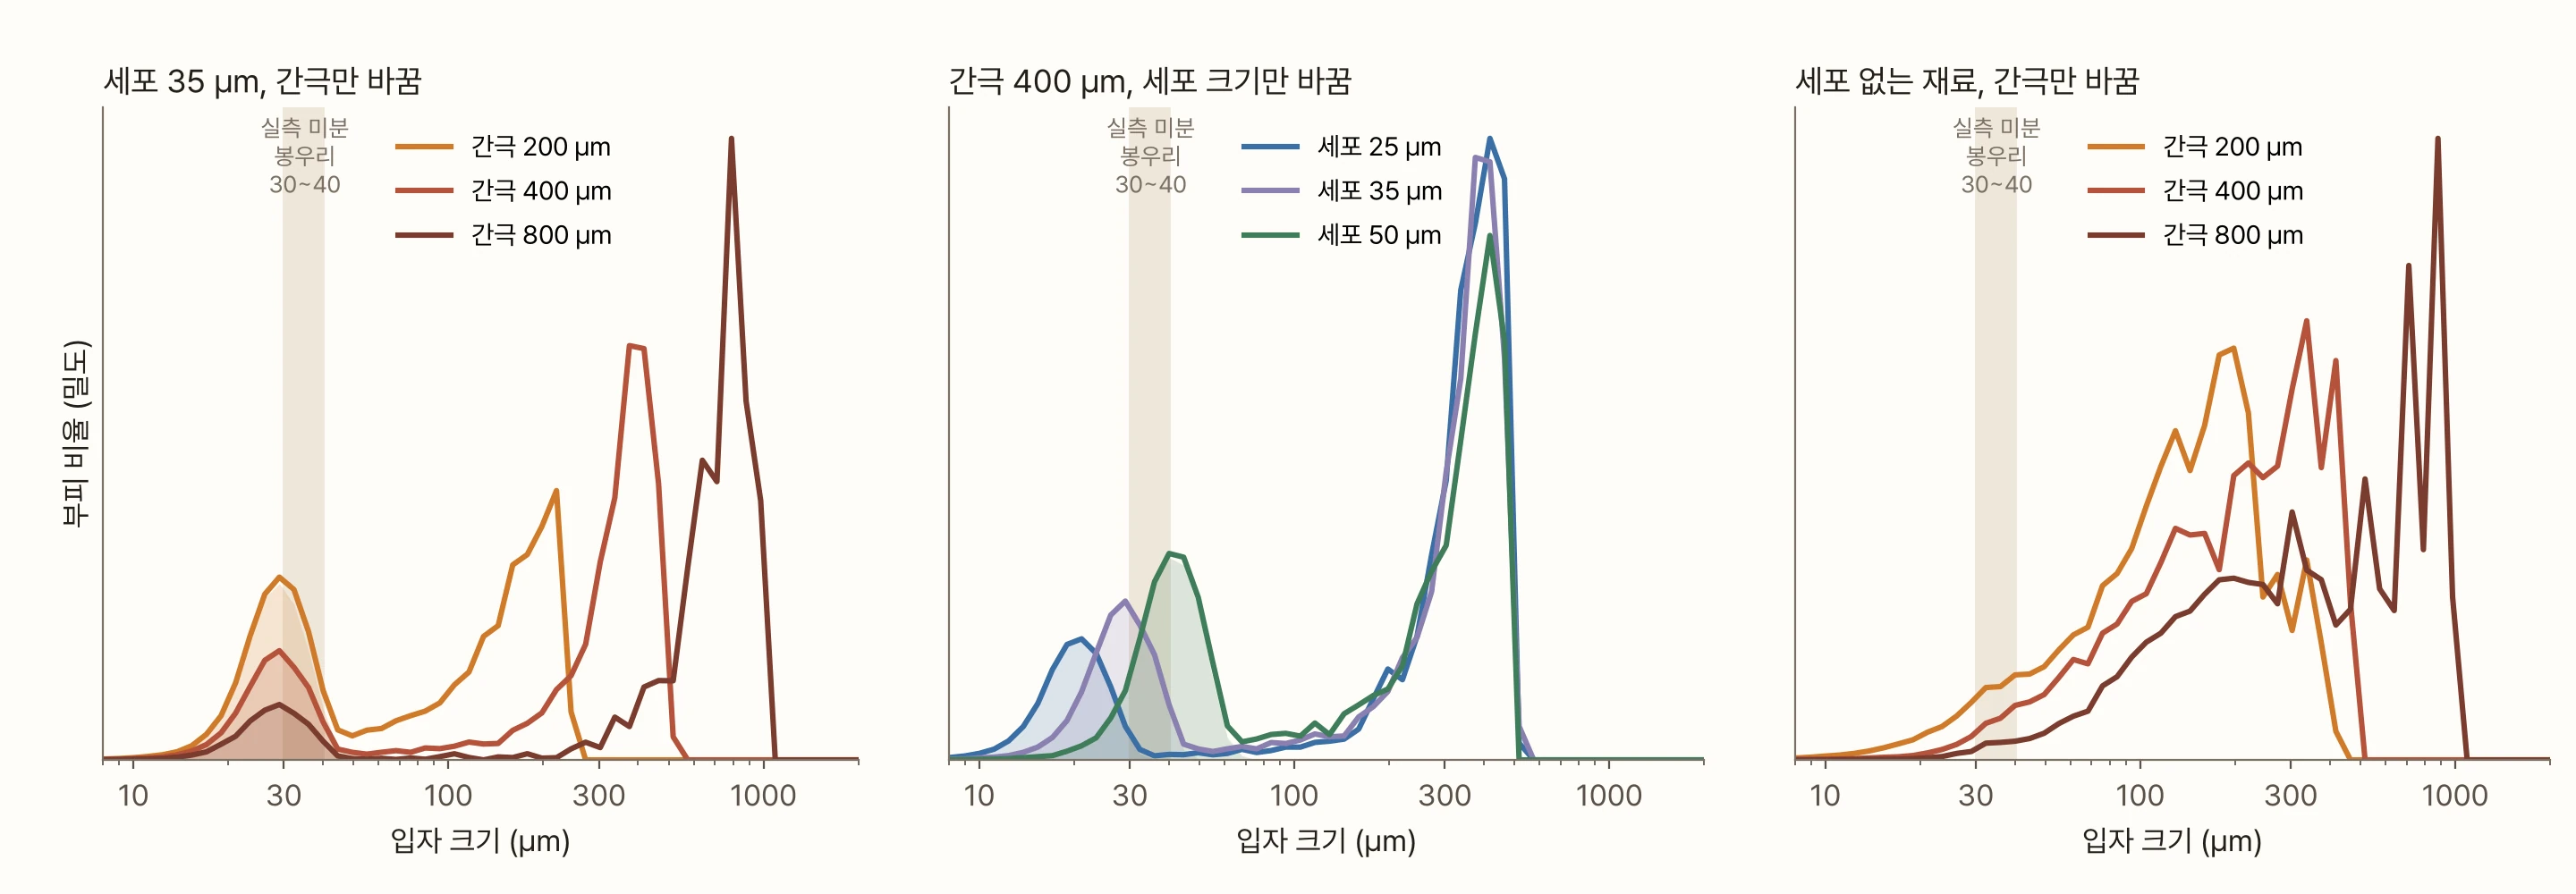
세 그래프가 하는 말은 각각 하나씩이다.
- 간극만 바꾸면(왼쪽) 큰 봉우리는 간극을 따라 220 µm에서 800 µm로 옮겨 가는데, 작은 봉우리는 세 경우 모두 약 29 µm에 있다. 높이만 달라진다. 실측 그림과 같은 모습이다
- 세포 크기만 바꾸면(가운데) 작은 봉우리가 21, 29, 40 µm로 세포를 따라 움직이고, 큰 봉우리는 거의 그대로다
- 세포를 없애면(오른쪽) 작은 봉우리가 사라진다
오른쪽 그래프에는 설명이 필요하다. 세포가 없는 재료에는 재료가 가진 고유의 길이가 없다. 그러면 균열 자리에서 부서지는 띠의 폭도, 부스러기의 가장 큰 크기도 지금 깨지는 조각의 크기에 비례할 수밖에 없다. 그래서 이 경우에는 띠 폭과 부스러기 크기를 조각 크기의 12%로 놓고, 부스러기는 광물 분쇄에서 흔히 쓰는 슈만 분포로 쪼갰다. 이렇게 하면 부스러기는 조각이 클 때는 크게, 작을 때는 작게 생기고, 결과는 한 자리에 모이지 않는다.
미분 봉우리가 한 자리에 있으려면 재료 안에 그 길이가 들어 있어야 한다. 커피에서는 그 길이가 세포다. 모델이 보여 주는 것은 여기까지다. 세포가 있고, 균열 자리의 세포가 통째로 혹은 벽 조각으로 떨어져 나온다고 가정하면, 그것만으로 실측과 같은 모양이 나온다.
미분의 양은 세포 크기 ÷ 간극을 따른다
봉우리의 자리는 세포가 정한다. 그러면 봉우리의 높이, 곧 미분이 얼마나 생기느냐는 무엇이 정할까.
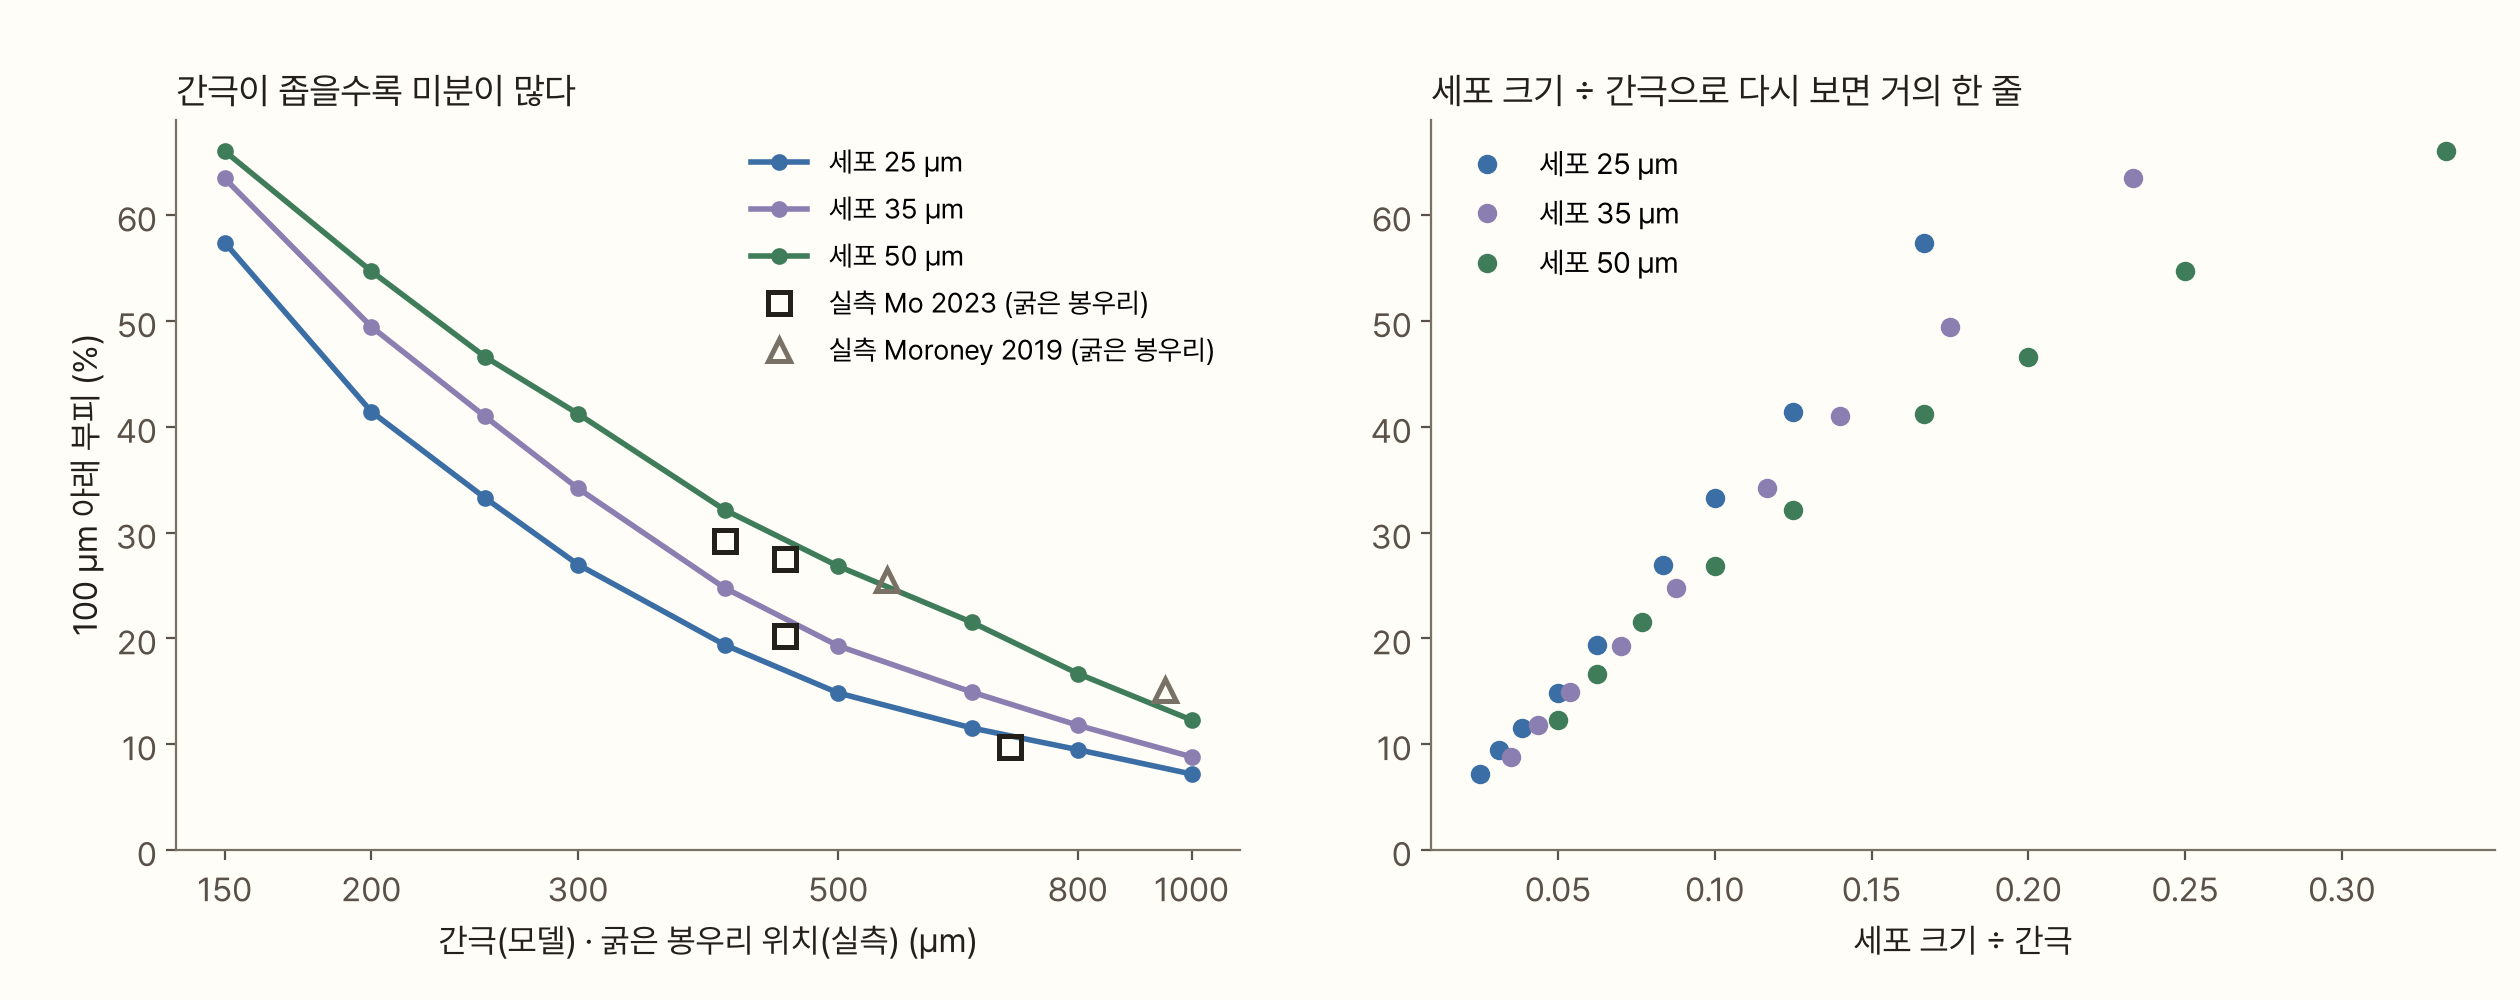
모델에서 미분은 균열 자리에서 생긴다. 균열 한 줄이 지나가면 세포 한 겹이 위험해진다. 조각을 간극 크기까지 줄이는 데 필요한 균열의 길이는 대략 '갈린 면적 ÷ 간극'에 비례하고, 그 균열을 따라 으스러지는 부피는 거기에 세포 한 겹의 두께를 곱한 것이다. 그래서 미분의 몫은 대략 '세포 크기 ÷ 간극'을 따른다.
왼쪽 그래프에서 세포 35 µm 모델은 간극 400 µm에서 100 µm 아래 부피가 25%, 800 µm에서 12%였다. 간극을 두 배로 넓히면 미분이 거의 절반이 된다. 오른쪽처럼 가로축을 세포 크기 ÷ 간극으로 바꾸면 세 곡선이 0.1 아래에서는 거의 한 줄로 모인다. 그보다 가늘게 갈면 조각 자체가 세포 몇 개짜리가 되어 이 어림이 맞지 않는다.
실측 점과 비교하면, 모 등(2023)의 네 가루는 '으스러짐'을 맞춘 대상이니 맞는 게 당연하다. 볼 만한 것은 모로니 등(2019)의 두 가루다. 맞추지 않은 자료인데 세포 50 µm 곡선 근처에 떨어졌다. 그라인더와 원두가 다르니 이 정도면 모양은 맞는다고 본다.
이 관계에서 나오는 예측이 하나 있다. 같은 간극이라면 세포가 큰 원두가 미분을 더 많이 만든다. 린지 등(2024)은 로스팅이 진할수록 세포 속 빈 공간이 커진다고 했다. 다크 로스트가 같은 설정에서 더 가늘게 갈린다는 관찰은 여럿 있다. 하지만 하퍼 등(2024)은 다크 로스트에서 큰 봉우리가 작은 쪽으로 옮겨 간 것을 봤고, 로열 커피의 실험(2021)은 400 µm 아래 질량을 쟀다. 둘 다 30~40 µm 미분의 양을 직접 비교한 것은 아니다. 세포 크기와 미분의 양을 같은 원두로 함께 잰 연구는 찾지 못했다. 이 예측은 아직 모델의 추정이다.
직접 해 보기
아래에서 세포 조직을 직접 갈아 보자. 위 그림은 2 mm 단면의 세포 조직이다. 흰 선이 균열이고 주황이 으스러진 세포다. '미분만'을 누르면 조각을 지우고 미분만 남긴다. 아래 그래프는 단면 네 장을 합친 부피 분포다. 주황 막대가 으스러진 세포에서 나온 가루이고, 회색 막대가 균열로 갈린 조각이다. 연한 띠는 지금 정한 세포 크기, 파란 점선은 간극이다.
간극을 150 µm에서 1,000 µm까지 바꿔 보면 회색 봉우리만 따라 움직이고 주황 봉우리는 제자리에 있다. 세포 크기를 바꾸면 주황 봉우리가 따라온다. '세포 없는 재료'로 바꾸면 주황이 넓게 퍼지며 봉우리가 사라진다.
이 결론이 빠뜨린 것
- 미분이 세포 조각이라는 것은 아직 설명이다. 미분 입자를 직접 찍어 세포벽 조각임을 보인 연구는 찾지 못했다. 이 글의 모델은 그 설명이 실측과 같은 모양을 낼 수 있다는 것까지만 보여 준다
- 모델은 2D 단면이다. 실제 입자는 3차원이고, 레이저 회절이 재는 '크기'는 단면 넓이로 센 크기와 다르다. 숫자보다 경향을 봐야 한다
- 균열은 곧은 직선이고, 세포는 균열 자리에서만 으스러진다. 실제로는 균열이 약한 곳을 따라 휘고, 버 표면에 닿아 문질리는 자리에서도 세포가 깨질 것이다. '으스러짐' 하나에 이 모든 것이 뭉쳐 있다
- 으스러진 세포 하나가 미분 하나라고 놓았다. 실제 미분에는 세포보다 훨씬 작은 벽 파편과 기름 방울도 섞인다. 습식으로 잰 슈미더 등(2023)의 분포에는 1~2 µm에도 작은 봉우리가 있었고, 우먼 등(2016)의 개수 기준 봉우리(13~14 µm)는 원두를 −196 °C로 얼려 갈면 31% 작아졌다. 이 부분은 모델에 없다
- 봉우리의 정확한 위치는 장비에 따라 25~50 µm로 다르다. 이 글은 '세포 크기 근처에서 움직이지 않는다'는 것만 말한다
- 세포벽 두께와 원두 한 알의 세포 수는 근사다. 벽 두께를 숫자로 잰 동료심사 문헌은 찾지 못했다
- 카메론 등(2020)의 분포 그림은 저작권 때문에 싣지 못했다. 표의 숫자는 그림에서 읽은 값이다
정리
- 커피 가루의 부피 분포에는 봉우리가 둘 있다. 다이얼을 돌리면 큰 봉우리는 따라 움직이는데, 미분 봉우리는 같은 논문 안에서 늘 같은 자리(장비에 따라 25~50 µm)에 있다
- 볶은 원두의 세포는 지름 20~45 µm다. 미분 봉우리와 같은 범위다. 볶는 동안 세포는 가운데가 비고 벽 골격이 남는다
- 미분이 세포벽 조각이라는 설명은 여러 연구자가 하지만, 미분을 직접 찍어 확인한 연구는 아직 찾지 못했다
- 균열 자리의 세포가 통째로 떨어져 나온다고만 가정한 2D 모델에서도, 간극을 200~800 µm로 바꾸는 동안 미분 봉우리는 약 29 µm에 머물렀다. 세포 크기를 바꾸면 봉우리가 따라 움직였고, 세포를 없애면 봉우리가 사라졌다
- 미분의 양은 대략 세포 크기 ÷ 간극을 따랐다. 간극을 두 배로 넓히면 미분이 거의 절반이 된다. 모 등(2023)에 맞춘 모델은 맞추지 않은 모로니 등(2019)의 두 가루와도 비슷했다
- 같은 간극이면 세포가 큰 원두가 미분을 더 만든다는 예측은 아직 확인되지 않았다
그라인더 다이얼은 큰 입자의 크기를 정한다. 미분의 크기는 정하지 못한다. 그건 커피나무가 원두를 만들 때 이미 정해 두었다. 다이얼이 바꿀 수 있는 것은 그런 미분이 얼마나 생기느냐뿐이다.
참고문헌
- Mo C, Johnston R, Navarini L, Suggi Liverani F, Ellero M (2023). Exploring the link between coffee matrix microstructure and flow properties using combined X-ray microtomography and smoothed particle hydrodynamics simulations. Scientific Reports 13, 16374. doi:10.1038/s41598-023-42380-y — 네 가루의 분포, 100 µm 아래 부피, d[3,2](표 1)
- Cameron MI, Morisco D, Hofstetter D, Uman E, Wilkinson J, Kennedy ZC, Fontenot SA, Lee WT, Hendon CH, Foster JM (2020). Systematically improving espresso: insights from mathematical modeling and experiment. Matter 2(3), 631–648. doi:10.1016/j.matt.2019.12.019 — 그림 2B 설정별 분포
- Moroney KM, O'Connell K, Meikle-Janney P, O'Brien SBG, Walker GM, Lee WT (2019). Analysing extraction uniformity from porous coffee beds using mathematical modelling and computational fluid dynamics approaches. PLOS ONE 14(7), e0219906. doi:10.1371/journal.pone.0219906
- Uman E, Colonna-Dashwood M, Colonna-Dashwood L, Perger M, Klatt C, Leighton S, Miller B, Butler KT, Melot BC, Speirs RW, Hendon CH (2016). The effect of bean origin and temperature on grinding roasted coffee. Scientific Reports 6, 24483. doi:10.1038/srep24483
- Eiermann A, Smrke S, Guélat L-M, Wellinger M, Rahn A, Yeretzian C (2020). Extraction of single serve coffee capsules: linking properties of ground coffee to extraction dynamics and cup quality. Scientific Reports 10, 17079. doi:10.1038/s41598-020-74138-1
- Harper JM, Bumbaugh RE, Hendon CH (2024). Strategies to mitigate electrostatic charging during coffee grinding. iScience 27, 110639. doi:10.1016/j.isci.2024.110639
- Schmieder BKL, Pannusch VB, Vannieuwenhuyse L, Briesen H, Minceva M (2023). Influence of flow rate, particle size, and temperature on espresso extraction kinetics. Foods 12(15), 2871. doi:10.3390/foods12152871 — 부록 그림 A1
- Lindsey ZR, Williams JR, Burgess JS, Moore NT, Splichal PM (2024). Caffeine content in filter coffee brews as a function of degree of roast and extraction yield. Scientific Reports 14, 28831. doi:10.1038/s41598-024-80385-3 — 볶은 원두 단면 SEM, 세포 빈 공간 넓이·세포 밀도(그림 3, 7)
- Schenker S (2000). Investigations on the Hot Air Roasting of Coffee Beans. 박사 학위 논문, ETH Zürich, Diss. ETH No. 13620 — 세포 구조, 카지·클리퍼드(1985) 세포 크기 인용
- Kazi T, Clifford MN (1985). Proceedings of the 11th ASIC Colloquium, Paris, 297–308 — 셴커(2000)를 통해 인용, 원문 미확인
- Smrke S, Eiermann A, Yeretzian C (2024). The role of fines in espresso extraction dynamics. Scientific Reports 14, 5612. doi:10.1038/s41598-024-55831-x
- Kornman C 외 (2021). Grinder alignment: an evaluation of consistency, cupping settings, and the impact of roast degree. Royal Coffee 블로그. 링크 — 업계 실험
- Delesse A (1847). Procédé mécanique pour déterminer la composition des roches. Comptes Rendus de l'Académie des Sciences 25, 544–545 — 단면 넓이 비율 = 부피 비율
- Schuhmann R (1940). Principles of comminution, I. Size distribution and surface calculations. AIME Technical Publication 1189 — 세포 없는 재료의 부스러기 분포
이미지 출처
- 첫 번째 그림: Mo C, Johnston R, Navarini L, Suggi Liverani F, Ellero M (2023), Scientific Reports 13:16374, 그림 3. CC BY 4.0. 바뀐 것 없음
- 두 번째 그림: Lindsey ZR, Williams JR, Burgess JS, Moore NT, Splichal PM (2024), Scientific Reports 14:28831, 그림 3. CC BY 4.0. 타원을 겹친 오른쪽 절반을 잘라 내고 왼쪽 사진만 썼다
- 표의 카메론 등(2020)·하퍼 등(2024) 숫자: 논문 그림에서 읽은 값이다. 원 그림은 싣지 않았다
- 그 밖의 그림, 표지, 시뮬레이션: 직접 제작